

Нейрохимические и функциональные основы долговременной памяти
- Единый синаптический механизм формирования, консолидации и хранения энграмм долговременной памяти (факты и гипотезы)
- Нейрон, синапс и глия как материальные носители энграммы памяти
- Нейрохимия синаптических мембран в процессе образования энграмм
- Некоторые аспекты фармакологии памяти и поиск неспецифических коннекторов
- Неспецифические коннекторы
- Общие принципы формирования энграмм
- Роль информационных макромолекул в процессах образования энграмм
- Роль нейромедиаторных систем головного мозга в процессах фиксации и хранения энграмм
- Участие пептидных гормонов и малых нейропептидов в процессах фиксации и хранения энграмм
- Функциональная организация головного мозга в процессе формирования энграмм
Распределение импульсов одного нейрона происходит по различным путям, так как после прохождения импульса между двумя нейронами наступает период отсутствия проводимости между ними, который составляет 150—200 мс. В результате одна и та же нервная клетка, как отмечалось выше, может включаться во множество различных нейронных цепей, участвующих в работе нескольких нейрональных ансамблей. Следовательно, процесс хранения информации в…
Стройную теорию организации лимбико-ретикулярных систем в процессах обучения предложил A. Routtenberg (1972). Процессы организации памяти он трактует с точки зрения реципрокных отношений между системой входа (ретикулярная система) и выхода (лимбическая система). Подтверждением ее явились эксперименты L. Goldstein и J. M. Nelsen (1973) по стимуляции этих систем фенамином, активирующим главным образом ретикулярную формацию, и никотином, возбуждающим…
Функциональной основой процесса сравнения информации является способность гиппокампа регистрировать смещенные во времени возбуждающие импульсы, приходящие из ретикулярной формации, перегородки и ведущие к возникновению тетаритма. Распространение этого ритма в кору головного мозга и повышение степени когерентности между ритмами коры и гиппокампа позволили W. R. Adey (1966, 1977) рассматривать эти процессы как доказательство фиксации следов в этих…
Как показывают электрофизиологические данные, каждый нейрон может принимать участие в различных реакциях животного, т. е. участвовать в работе нескольких нейронных ансамблей. В то же время он обладает чрезвычайной избирательностью в проведении возбуждения по различным каналам связи. Что же лежит в основе этой избирательности? Как отмечалось выше, нейрон является полицептивным образованием, т. е. он чувствителен к…
Принцип дивергенции, напротив, предполагает возможность распределения эффекторного потока от нейрона за счет разветвления его дендритов и аксонов и образования множества связей с другими нейронами. Принцип реверберирующих (замкнутых) цепей предполагает существование нейронов с двусторонними обратными связями между собой. Возбуждение в таких системах может поддерживаться относительно длительное время при условии выключения в них тормозных нейронов. Возбуждение распространяется…

Пресинаптическое торможение обеспечивается одновременным возбуждением двух аксонов, один из которых заканчивается синапсом на терминалях другого, последующим уменьшением пороговой величины возбуждения и торможением секреции медиатора. Одним из характерных свойств нейрональных сетей является так называемое латеральное торможение. В этом случае возбуждение, поступающее, например, в нейрон А, передается одновременно и на тормозящие промежуточные нейроны, которые, в свою очередь,…
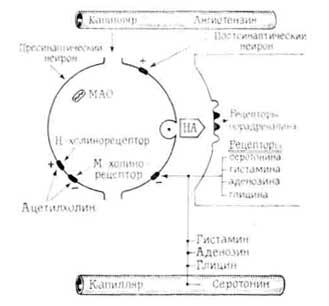
Предполагается, что под влиянием нервного импульса высвобождение медиатора носит квантовый характер. По-видимому, это достигается за счет дискретных изменений в проницаемости пресинаптической мембраны. Гипотеза выделения медиаторов через мембранные каналы более убедительна по сравнению с везикулярной [Marchbanks R. Т., 1978]. Вероятно, везикулы в основном служат резервуаром для хранения запасов медиаторов и их транспорта к пресинаптической мембране. В…
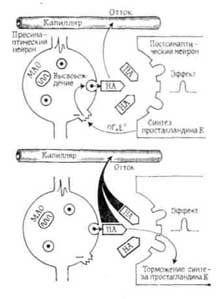
Принято считать, что под воздействием медиатора в области рецептора происходят конформационные изменения его белковых макромолекул. Возникает локальный электрический ток, и мембрана деполяризуется, что вследствие суммарного эффекта сопровождается дальнейшими конформационными превращениями различных ее участков. Поэтому отрицательно заряженная мембрана из гидрофобного состояния, наблюдаемого в покое, переходит в гидрофильное состояние, характерное для возбуждения. Электрический потенциал вдоль таких точек…
Если проследить процесс формирования механизмов передачи нервных импульсов в ходе эволюции, то можно отметить интересную закономерность: химический способ передачи информации в наиболее усовершенствованной форме преобладает у высших животных. Это объясняется возрастающим объемом переработки информации, так как передача сигнала посредством медиатора является самой простой и надежной. Однако при стабильном объеме и качественно однородной информации живая природа…
Следует учитывать и поведение так называемых шумящих нейронных цепей, создающих фоновую активность и имеющих довольно большое значение в деятельности головного мозга в целом. К шумящим следует отнести нейроны, способные спонтанно разряжаться благодаря беспорядочному высвобождению медиаторов. Сеть из N-числа таких нейронов описывают с помощью Nвектора [Martin Т. Р., 1972]. В частности: Pk= (piki…pN1k), что является одним…
Изменения эффективности синаптической передачи под влиянием активности нескольких входов нейрона носят характер гетеросинаптической пластичности [Майоров В. М., 1977]. Удовлетворительное объяснение гипотеза пластичности синапсов получила благодаря изучению изменений чувствительности пре и постсинаптических рецепторов, изменения интенсивности высвобождения медиатора, аксоплазматического тока гормонов, пептидов и нейромедиаторов [Luco J. V., 1974]. Механизмом же, запускающим эти изменения, является предшествующее функционирование синапса….
Установлено, что поляризация различных структур неоднозначно влияет на условнорефлекторное поведение. Так, поляризация ретикулярной формации среднего мозга обусловливает общую, а височной коры — модально специфическую активацию формирования, закрепления и воспроизведения следов обучения. В то же время поляризация дорсального гиппокампа подавляет эти процессы. Поведенческие проявления при поляризации также определяются характером активируемых следов памяти. Так, в условиях угашения…
